Навіщо давнім звірам вітрила, пластини й гребені?
Часто вчені й самі ще не знають і сперечаються. Може, щоб гріти або остуджувати тіло, а може, щоб красуватися перед іншими. 1,2,3
Про кого це
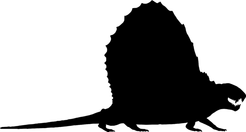
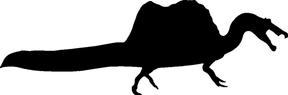
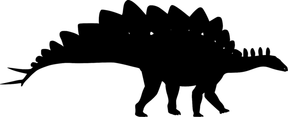
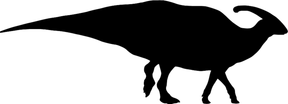
Вітрила й пластини
- Вітрило диметродона трималося на дуже довгих кісточках, які виростали з хребта. Навіщо йому вітрило, досі загадка. 4,1,2
- Із хребта спінозавра теж росли дуже високі кістки-шипи. На них трималося вітрило на спині. 5
- Пластини стегозавра стояли у два ряди, зигзагом. Навіщо вони йому були, вчені досі сперечаються. Може, для кількох справ одразу. 6,7,8,9
- На пластинах стегозавра видно борозенки. Це сліди судин, по яких текла кров. 10
Гребені, колючки й булава
- Гребінь паразауролофа був порожній усередині. Вчені порахували, що в такому гребені міг гудіти низький звук. Але справжнього голосу паразауролофа ніхто ніколи не чув. 11,12,13
- Вчені думають, що птеранодони з великим гребенем на голові були самцями. Великим гребенем самці, мабуть, хизувалися. 14
- У скам'янілості одного самця стетаканта на спині збереглася пласка штука з колючками. Для чого вона, ніхто точно не знає. Може, щоб красуватися, а може, щоб лякати. 15,16,17,18
- Для чого анкілозаврові була булава на хвості, теж точно не знають. Може, щоб відбиватися від хижаків, а може, щоб битися з іншими анкілозаврами. 19,20
Ще запитання
Для дорослих
Вітрило диметродона. Bramwell & Fellgett (1973) моделювали обігрів і охолодження; Tomkins et al. (2010) за алометрією підтримують статевий показ; Huttenlocker et al. (2010) показали, що будова кісток обмежує реконструкції вітрила, але теплову роль не вирішили. AMNH згадує ще й залякування. Жодна з функцій не спостерігалася безпосередньо. 1,2,4,3
Пластини стегозавра. Farlow et al. (1976) продували моделі в аеродинамічній трубі й підтримали ідею, що пластини віддавали тепло. Main et al. (2005) доводили, що будова тканин не підтверджує внутрішнього радіатора, і схилялися до впізнавання своїх або демонстрації. Farlow et al. (2010) знайшли будову, сумісну з теплообміном, але визнали, що вона цієї функції не доводить. Пластини могли мати кілька ролей. 7,8,9
Гребінь паразауролофа. Weishampel (1981) змоделював гребінь як резонатор для низьких звуків, а Farke et al. (2013) переглянули цю ідею з урахуванням того, як гребінь змінювався з віком. Жодна з робіт не відновлює справжній голос тварини, тож будь-яке звучання паразауролофа, яке можна почути сьогодні, є моделлю, а не записом. 12,13
Звідки ми це знаємо
- Bramwell & Fellgett (1973). Thermal Regulation in Sail Lizards
- Tomkins et al. (2010). Positive Allometry and the Prehistory of Sexual Selection
- American Museum of Natural History. Dimetrodon
- Huttenlocker et al. (2010). Comparative anatomy and osteohistology of hyperelongate neural spines in the sphenacodontids Sphenacodon and Dimetrodon (Amniota: Synapsida)
- Ibrahim et al. (2014). Semiaquatic adaptations in a giant predatory dinosaur
- Natural History Museum, London. Stegosaurus
- Farlow et al. (1976). Plates of the dinosaur stegosaurus: forced convection heat loss fins?
- Main et al. (2005). The evolution and function of thyreophoran dinosaur scutes: implications for plate function in stegosaurs
- Farlow et al. (2010). Internal vascularity of the dermal plates of Stegosaurus (Ornithischia, Thyreophora)
- American Museum of Natural History. Stegosaurus: fossil skeleton
- Natural History Museum, London. Parasaurolophus
- Weishampel (1981). Acoustic analyses of potential vocalization in lambeosaurine dinosaurs (Reptilia: Ornithischia)
- Farke et al. (2013). Ontogeny in the tube-crested dinosaur Parasaurolophus (Hadrosauridae) and heterochrony in hadrosaurids
- Bennett (1992). Sexual dimorphism of Pteranodon and other pterosaurs, with comments on cranial crests
- Lund (1974). Stethacanthus altonensis (Elasmobranchii) from the Bear Gulch Limestone of Montana
- Maisey (2009). The spine-brush complex in symmoriiform sharks (Chondrichthyes; Symmoriiformes), with comments on dorsal fin modularity
- Zangerl (1984). On the microscopic anatomy and possible function of the spine-brush complex of Stethacanthus (Elasmobranchii: Symmoriida)
- Lund (1985). Stethacanthid elasmobranch remains from the Bear Gulch Limestone (Namurian E2b) of Montana
- Arbour (2009). Estimating impact forces of tail club strikes by ankylosaurid dinosaurs
- Arbour et al. (2022). Palaeopathological evidence for intraspecific combat in ankylosaurid dinosaurs
Ми анонімно рахуємо відвідування, без cookies.